חלק 1 - מהשאלה המחקרית להיפותזה
השלבים בתהליך המדעי
מחקר מדעי מתחיל לעיתים מתצפית (Observation) שעוררה עניין: תופעה שנראתה בניסוי, ממצא בספרות או התנהגות בלתי צפויה של מערכת ביולוגית. בעקבות התצפית מתעוררת שאלה, אך לפני שאפשר להפוך אותה למחקר יש לברר מה כבר ידוע ומה עדיין אינו מוסבר. לשם כך בוחנים את הספרות ואת הנתונים הקיימים ומזהים את פער הידע (Gap of knowledge). השאלה המחקרית צריכה להתמקד בפער הזה, ולא לחזור על דבר שכבר הוכח.
לאחר ניסוח שאלת המחקר מגיע שלב ההיפותזה (Hypothesis) - הנחת עבודה המציעה הסבר אפשרי לתופעה, או מנבאת מה יקרה בתנאים מוגדרים. ההיפותזה אינה הממצא עצמו, אינה שיטת המחקר ואינה מסקנה שנוסחה לאחר קבלת התוצאות. היא הצעה שאפשר להעמיד למבחן, וממנה נגזרים תכנון הניסוי, בחירת המדדים, הביקורות ושיטות העבודה.
התהליך אינו תמיד ליניארי. תוצאותיו של ניסוי עשויות לתמוך בהיפותזה, לסתור אותה או לעורר תצפית חדשה שאינה מוסברת באמצעותה. במקרים כאלה חוזרים אל המידע הקיים, מנסחים שאלה נוספת ומציעים היפותזה חדשה. לכן מחקר מתקדם במחזורים של תצפית ← פער ידע ← שאלת מחקר ← היפותזה ← ניסוי ← תוצאות ← בחינה מחדש של ההסבר.
מהי היפותזה טובה?
היפותזה טובה היא טענה ברורה, ממוקדת ובת־בדיקה. כדי שתוכל לכוון עבודה מדעית, רצוי שיהיו לה כמה מאפיינים:
- ניסוח פשוט ומדויק: היפותזה מתמקדת בקשר מוגדר בין משתנים, במקום לכלול שורה ארוכה של תהליכים בלתי תלויים. כאשר יש כמה טענות שונות, יש לפרק אותן כדי שאפשר יהיה לבחון כל אחת מהן.
- יכולת מדידה: צריכים להיות מדדים שאפשר לאסוף באמצעותם נתונים הרלוונטיים לטענה. אין די במושגים כלליים שלא הוגדר כיצד מודדים אותם.
- כיווניות וניבוי: כאשר הדבר מתאים לשאלה, יש להגדיר מה צפוי לעלות, לרדת או להשתנות בעקבות שינוי אחר, ולא להסתפק בטענה שמשהו רק “משפיע” על משהו.
- בסיס מדעי (Rationale): ההיפותזה נשענת על תצפיות, ידע קודם או היגיון ביולוגי. אפשר לכתוב את הרציונל בנפרד, כדי לשמור על ניסוח ההיפותזה קצר ובהיר.
- ישימות (Feasibility): חייבת להיות דרך מעשית לבדוק את הטענה באמצעים, בזמן, בנתונים ובמערכות המחקר הזמינים. רעיון שאין אפשרות לבחון בפועל אינו יכול להוביל לניסוי מתאים בשלב הנוכחי.
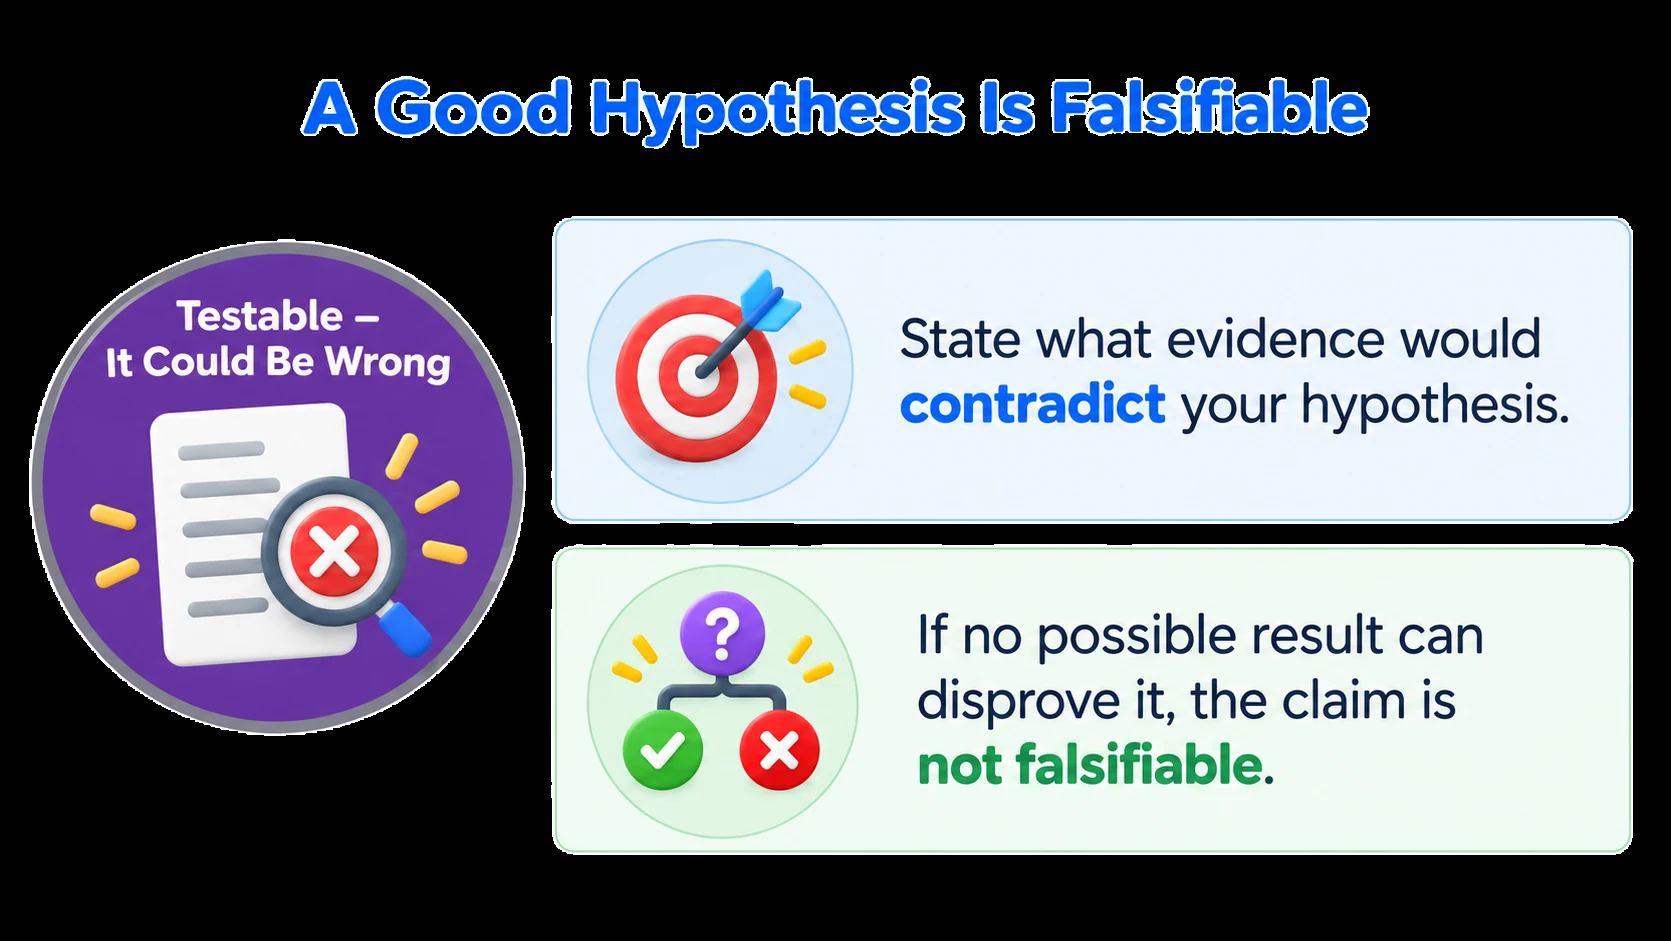
- אפשרות להפרכה (Falsifiability): חייבת להתקיים לפחות תוצאה אפשרית אחת שתסתור את הניבוי. אם כל תוצאה אפשרית יכולה להתפרש כאישור לטענה, ההיפותזה אינה ניתנת להפרכה.
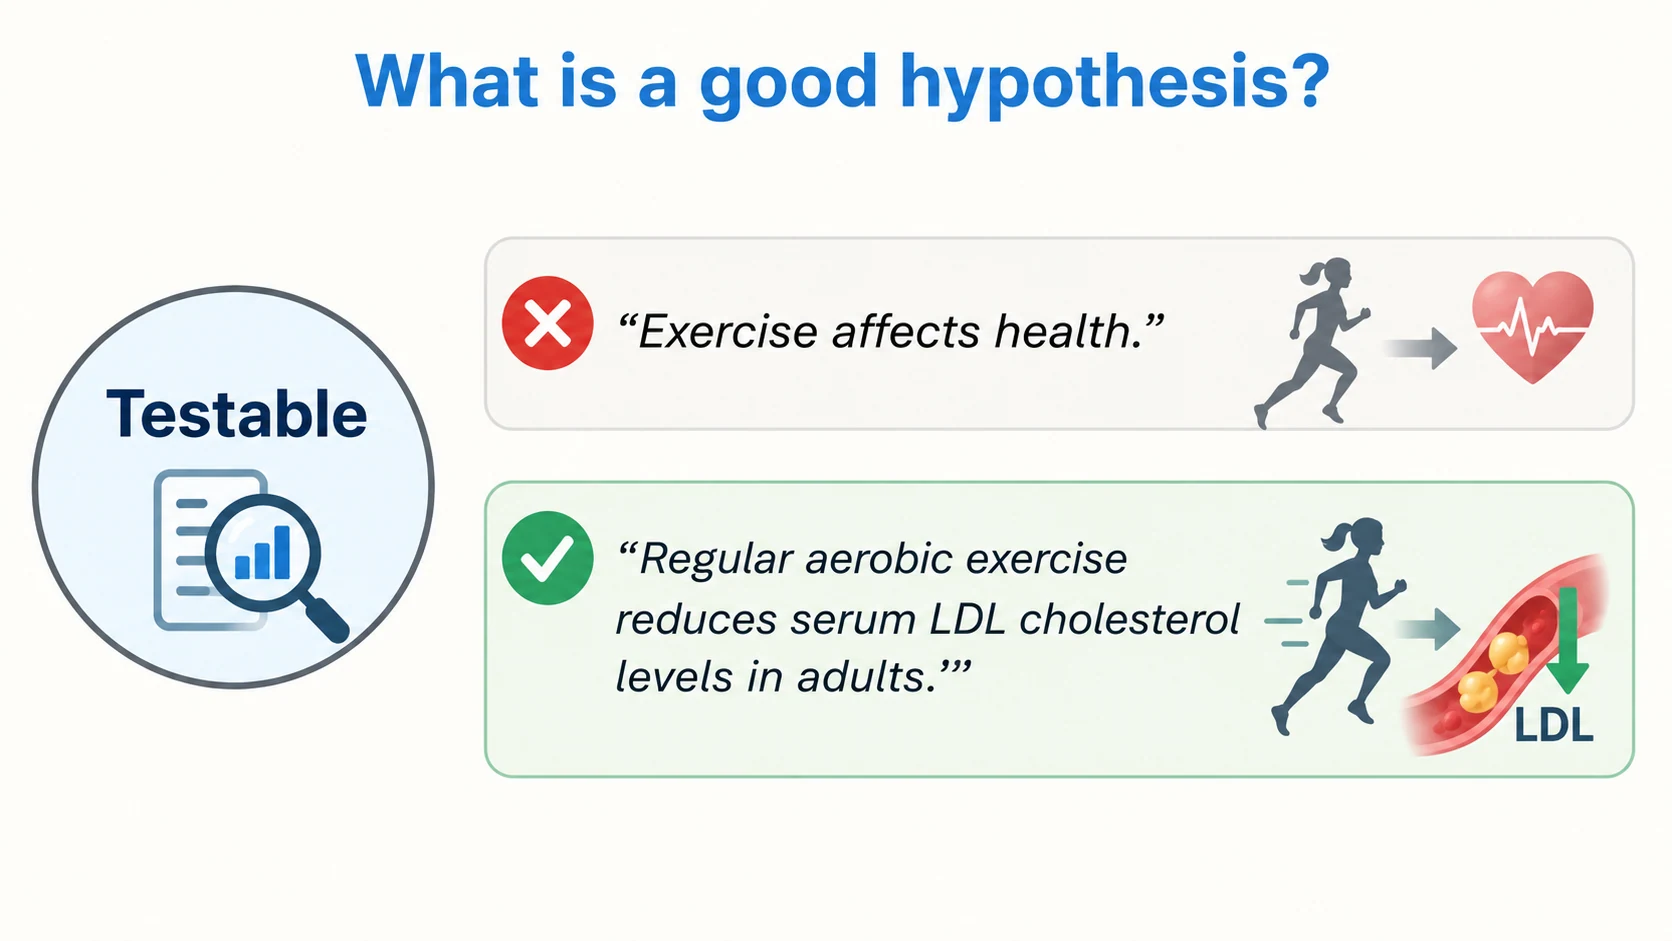
דוגמה: פעילות גופנית ובריאות
הטענה “פעילות גופנית משפיעה על הבריאות” רחבה מדי: לא ברור איזו פעילות נבדקת, מהו מדד הבריאות ומהו כיוון ההשפעה הצפוי. לעומתה, “פעילות אירובית סדירה לאורך זמן מפחיתה את רמת LDL כולסטרול בדם” היא היפותזה ממוקדת יותר. ניתן להגדיר מהי פעילות אירובית סדירה, למדוד את רמות ה־LDL ולהשוות את התוצאות לציפייה.
כדי שההיפותזה תהיה בת־הפרכה צריך להגדיר מראש מה ייחשב כתוצאה הסותרת אותה: למשל, אם בתנאי הבדיקה שהוגדרו לא נצפתה הירידה החזויה ב־LDL. עצם העובדה שתוצאה אינה מתאימה להיפותזה אינה הופכת את הניסוי לכישלון; גם תוצאה שמפריכה את הנחת העבודה יכולה לקדם את הידע.
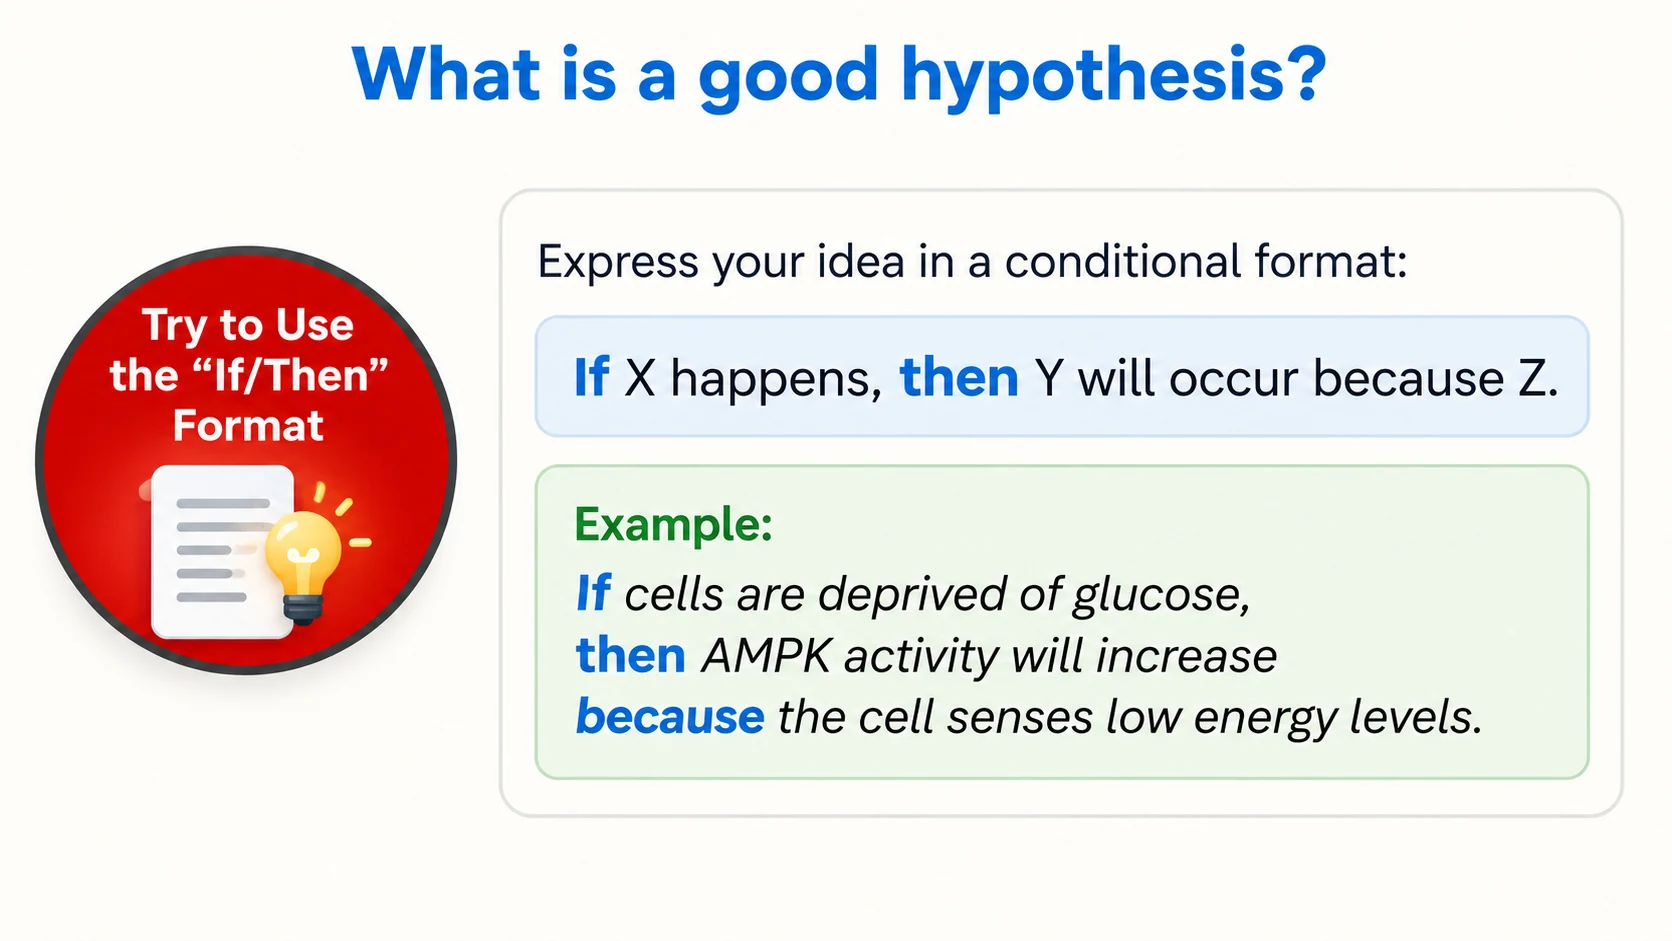
ניסוח If-Then-Because
אחת הדרכים לסדר היפותזה היא בנוסח If-Then-Because:
- If - אם נבצע שינוי מסוים או ניצור תנאי מוגדר;
- Then - אז צפויה תוצאה מסוימת שנוכל למדוד;
- Because - משום שקיים הסבר או רציונל ביולוגי שמצדיק את הציפייה.
החלק האחרון אינו חייב להופיע במשפט ההיפותזה עצמו; לעיתים הוא מוצג בשורה נפרדת כרציונל. אפשר גם לנסח היפותזה בצורת קביעה ולא בתבנית תנאי, כל עוד ברור מה צפוי לקרות ומדוע הניסוי יכול לתמוך בטענה או לסתור אותה.
שאלת מחקר שואלת דבר שעדיין אינו ידוע; היפותזה מציעה תשובה אפשרית או הסבר; ו־מטרות המחקר (Research aims) מפרקות את הדרך לבדיקת אותה תשובה לצעדים שאפשר לבצע. אין לבלבל ביניהן: “מהו מנגנון הנטרול?” היא שאלה, ואילו “הנוגדן מנטרל משום שהוא מערער את יציבות הספייק” היא היפותזה שאפשר לתכנן ניסוי לבדיקתה.
למה חשוב להגדיר מראש מה יסתור את ההיפותזה?
לפני הניסוי צריך להיות מסוגלים להשיב: איזו תוצאה תראה שההסבר שלנו אינו נכון? שאלה זו מסייעת להחליט אילו מדידות וביקורות דרושות. אין הכרח לכתוב את התוצאה המפריכה בתוך משפט ההיפותזה, אך החוקר צריך לדעת מהי. כך נמנעים ממצב שבו כל ממצא מפורש בדיעבד כאילו הוא מאשש את ההסבר המקורי.
גם פרסום מחקר קודם אינו הופך ממצא לאמת שאסור לבחון מחדש. כאשר ניסוי קודם אינו משוחזר, או כאשר כמה שיטות וביקורות שונות מובילות לתוצאות סותרות, אפשר לבחון מחדש את הנחת העבודה. היכולת להפריך ממצא, ולא רק לשחזר אותו, היא חלק חיוני מהמחקר. בנוסף, דיון עם עמיתים ומנחים יכול לחשוף הנחות סמויות, להצביע על ביקורות חסרות ולשפר את ניסוח ההיפותזה ואת האפשרות לבדוק אותה.
חלק 2 - מחקר על נוגדנים מנטרלים ל־SARS-CoV-2
הרקע הביולוגי: Spike, RBD ו־ACE2
SARS-CoV-2 הוא וירוס RNA בעל מעטפת, שעל פניה נמצא חלבון ה־Spike (S). הספייק מאורגן כ־Trimer המורכב משלושה עותקים של החלבון. כל עותק כולל שני חלקים מרכזיים, S1 ו־S2. בחלק S1 נמצא Receptor-Binding Domain (RBD), שמזהה את הרצפטור התאי ACE2 ומאפשר לווירוס להיקשר אל התא. חלק S2 משתתף בהמשך התהליך, ובכלל זה ב־Membrane fusion הנדרש לכניסת הווירוס.
הספייק עובר עיבוד וביקוע במהלך הבשלתו. אף שקיימת חלוקה ל־S1 ול־S2, החלקים יכולים להישאר מאורגנים יחד בקומפלקס בזכות אינטראקציות לא־קוולנטיות. לכן פגיעה ביציבות האינטראקציות ביניהם עשויה להשפיע על פעילותו של הספייק גם בלי שהנוגדן חוסם ישירות את ACE2.
התגובה החיסונית יכולה לכלול Neutralizing antibodies (nAbs) - נוגדנים שמונעים הדבקה של תאים על ידי הווירוס. הנוגדן מזהה אזור מוגדר באנטיגן המכונה Epitope, ואילו אזור הקישור בנוגדן עצמו מכונה Paratope. בקצה הנוגדן נמצא אזור ה־Fab, הכולל את המרכיבים האחראים לזיהוי האנטיגן ולקישור אליו.
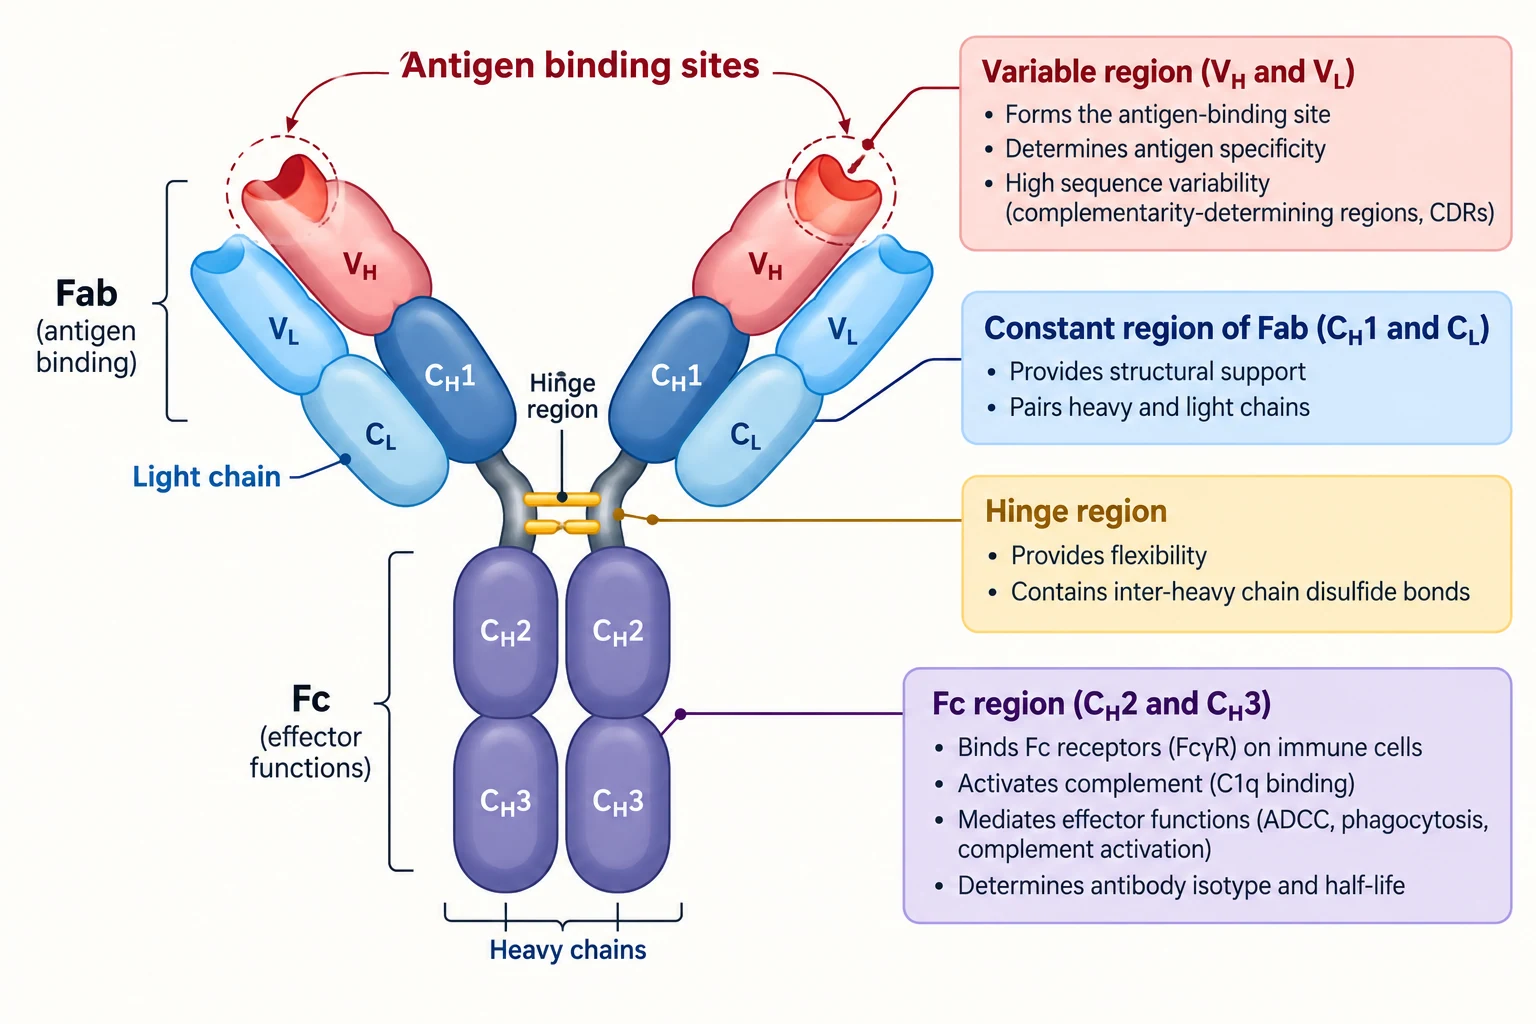
נוגדנים יכולים לנטרל את הווירוס בדרכים שונות. יש נוגדנים החוסמים את הקישור בין RBD ל־ACE2; אחרים מפריעים לאיחוי הממברנות, ליציבות הספייק או לשלבים אחרים במחזור ההדבקה. לכן גילוי שנוגדן מנטרל וירוס עדיין אינו עונה על השאלה כיצד הוא עושה זאת.
התצפית: נוגדנים שפועלים נגד וריאנטים רבים
מתוך דגימות של אנשים שהחלימו מקורונה בודדו נוגדנים מנטרלים, ובהם שני נוגדנים שנקראו TAU-1109 ו־TAU-2310. בבדיקות פעילות נמצא שהם מסוגלים לנטרל מגוון רחב של וריאנטים של SARS-CoV-2, לרבות וריאנטים שהצטברו בהם מוטציות ואשר התחמקו מחלק מהנוגדנים שנוצרו נגד זנים קודמים.
תצפית זו מעוררת שאלה: כיצד שני נוגדנים שבודדו בשלבים מוקדמים של המגפה ממשיכים לזהות ולנטרל גם וריאנטים חדשים יותר? ממצא נוסף היה שהנוגדנים אינם מתחרים עם ACE2 על אתר הקישור שלו, אף על פי שהם נקשרים ל־RBD. לכן לא ניתן להסתפק במנגנון הרגיל של חסימת קישור הרצפטור כדי להסביר את פעילותם.
שאלת המחקר וההיפותזה הראשונה
שאלת המחקר: מהם האפיטופים שאליהם נקשרים TAU-1109 ו־TAU-2310, וכיצד קישור אליהם מאפשר נטרול של מגוון רחב של וריאנטים של SARS-CoV-2?
אפשר להציע שהנוגדנים מנטרלים את הווירוס משום שהם נקשרים ל־RBD, אך טענה זו אינה מספקת: עצם הקישור ל־RBD כבר היה ידוע, והיא אינה מסבירה מדוע הפעילות נשמרת על אף השינויים בין הווריאנטים. ההיפותזה צריכה לענות על פער הידע, ולא רק לתאר תצפית ידועה.
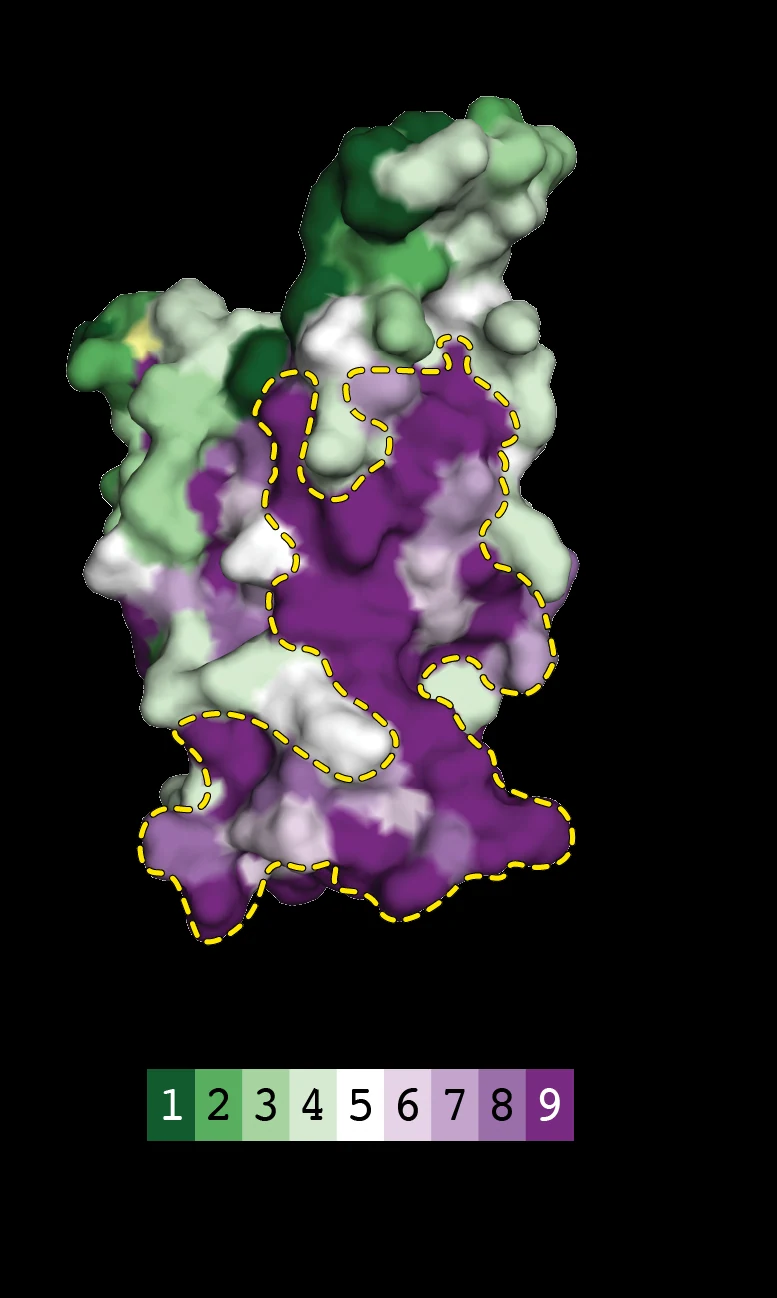
ההיפותזה הראשונה: TAU-1109 ו־TAU-2310 מנטרלים מגוון רחב של וריאנטים מפני שהם מזהים Epitope שמור אבולוציונית (Evolutionarily conserved epitope) ב־RBD - אזור שהרצף או המבנה שלו משתנים מעט יחסית בין הווריאנטים.
ההסבר הוא שאם הנוגדנים נקשרים לאזור שמור, שינויים המתרחשים באזורים אחרים של הספייק לא בהכרח יפגעו בקישור. לעומת זאת, מציאת אפיטופים משתנים מאוד, או זיהוי של אובדן קישור בעקבות השינויים האופייניים לווריאנטים, היו מערערים את ההיפותזה.
בדיקת ההיפותזה: פתרון מבנה הקומפלקס
כדי לזהות את אתר הקישור בודדו את אזור ה־Fab של כל נוגדן ואת ה־RBD, יצרו קומפלקס בין שני המרכיבים והכינו גבישים. באמצעות X-ray crystallography נפתר המבנה של קומפלקסי RBD-Fab, וכך ניתן היה לזהות את האזורים שבהם מתרחשת האינטראקציה.
המבנים הראו ששני הנוגדנים נקשרים לאזורים דומים ב־RBD, מחוץ לאזור שבו ACE2 נקשר. השוואת המבנה למבנה של קומפלקס RBD-ACE2 הראתה שאין חפיפה ישירה בין אתרי הקישור, בהתאם לתצפית שהנוגדנים אינם מתחרים עם ACE2.
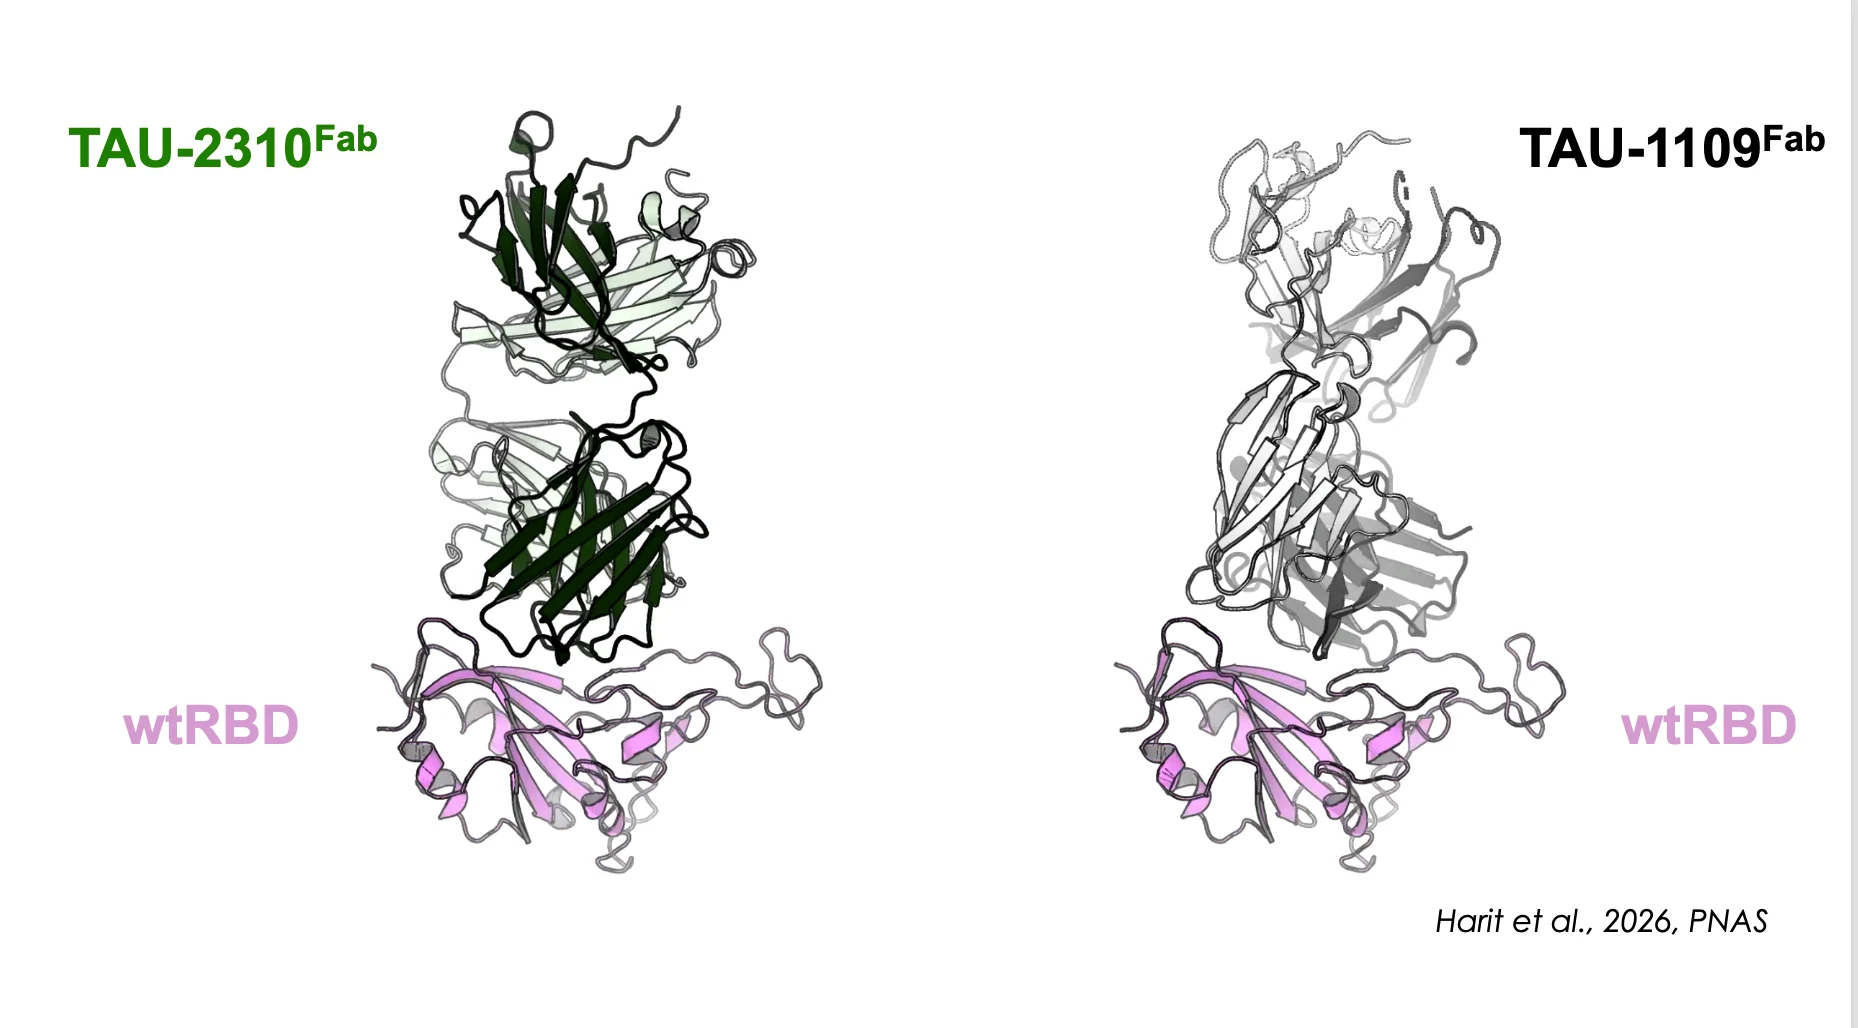
בהמשך בוצעה השוואת רצפים (Sequence alignment) בין וריאנטים כדי להעריך את מידת השימור האבולוציוני של חומצות האמינו באזורים השונים ב־RBD. האזורים שאליהם נקשרו שני הנוגדנים התגלו כ־Highly conserved epitopes. הממצאים המבניים והשוואת הרצפים תמכו בהיפותזה שהנטרול הרחב קשור לזיהוי של אזור שמור.
בדיקת המשמעות של חומצות האמינו באתר הקישור
מבנה גבישי מספק תמונה של אינטראקציה אפשרית, אך כדי לבחון אם האינטראקציה שנראתה במבנה אכן חשובה לקישור, נעשה שימוש ב־Mutagenesis: יצירת מוטציות מוגדרות בחומצות אמינו באזור האפיטופ, ובדיקה כיצד הן משנות את קישור הנוגדן.
המדד שהוצג היה (K_D), המתאר את חוזק הקישור בשיווי משקל; ערך (K_D) גבוה יותר מצביע על קישור חלש יותר. כאשר שינו חומצות אמינו מסוימות באתרי הקישור, נצפתה ירידה משמעותית באפיניות של הנוגדנים. לדוגמה:
| נוגדן | RBD שנבדק | (K_D) |
|---|---|---|
| TAU-1109 | Wuhan-Hu-1 | (6.73\times10^{-10}\ \mathrm{M}) |
| TAU-1109 | R357A + E471A | (5.78\times10^{-6}\ \mathrm{M}) |
| TAU-2310 | Wuhan-Hu-1 | (8.67\times10^{-10}\ \mathrm{M}) |
| TAU-2310 | R357A | (3.37\times10^{-8}\ \mathrm{M}) |
הפגיעה בקישור בעקבות המוטציות מסייעת לאמת שהאינטראקציות שנצפו במבנה הן בעלות משמעות תפקודית. מכאן התקבלה תמיכה בהיפותזה הראשונה, אך לא הושלמה הבנת מנגנון הנטרול עצמו.
חלק 3 - מתצפית בלתי צפויה להיפותזה חדשה: S1 shedding
שאלת המחקר השנייה
אם TAU-1109 ו־TAU-2310 נקשרים לאפיטופים שמורים שאינם חוסמים את הקישור ל־ACE2, כיצד הם מנטרלים את הווירוס? שאלה זו נוצרה דווקא בעקבות התוצאות של המחקר הראשון. ההיפותזה על אתר קישור שמור הסבירה את רוחב הנטרול, אך לא את הפעולה המולקולרית שמונעת מהווירוס להדביק תא.
כדי לנסח היפותזה נוספת היה צורך לחזור לתצפיות ולבחון מידע שנאסף במהלך פתרון המבנים:
- מגבלה בקונפורמציה של ה־Spike: כאשר מיקמו את קומפלקס RBD-Fab על מבנים של ספייק שלם, נראה שהנוגדנים אינם יכולים להיקשר באחת הקונפורמציות המוכרות של ה־RBD בלי ליצור הפרעה סטרית לחלקים סמוכים בספייק. מכאן עלתה האפשרות שהקישור משנה את ארגון הקומפלקס.
- תצפית במיקרוסקופ אלקטרונים: חלקיקי Spike שנבדקו בנוכחות הנוגדנים נראו פחות יציבים או מפורקים, במקום לשמור על המבנה התקין הצפוי. בתחילה אפשר היה לפרש זאת כבעיה טכנית בהכנה, בהעברה או בשימור של הדגימה, אך התופעה סיפקה כיוון לבירור נוסף.
התצפית השנייה מדגימה את החשיבות של בחינת ממצא בלתי צפוי. לא כל תמונה חריגה מעידה על מנגנון ביולוגי חדש; ייתכן שמדובר ב־Artifact שנוצר במהלך הניסוי. יש צורך בביקורות ובניסוי נוסף שיבדילו בין בעיה טכנית לבין תופעה אמיתית.
ההיפותזה השנייה
TAU-1109 ו־TAU-2310 נקשרים לספייק ומערערים את האינטראקציות בין S1 ל־S2, באופן המוביל ל־S1 shedding - היפרדות של יחידת S1 מהספייק.
זוהי היפותזה ממוקדת יותר מהטענה הכללית שהנוגדנים “משנים את מבנה הספייק”. היא מנבאת תוצאה שאפשר למדוד: לאחר חשיפה לנוגדנים צפויה ירידה בכמות S1 שנותרת קשורה לספייק ועלייה בכמות S1 שמשתחררת לסביבה. אם לא מתרחשת הפרדה כזו בהשוואה לביקורות המתאימות, המנגנון המוצע אינו נתמך.
ניסוי ה־Shedding והראיות למנגנון
כדי לבדוק את ההיפותזה השתמשו במערכת של תאים המבטאים את חלבון הספייק, הדגירו אותם עם הנוגדנים ובחנו את השינויים בספייק. המדידות כללו Flow cytometry לבחינת הסיגנל התאי, ובנוסף Western blot לזיהוי S1 ששוחרר אל המדיום שמסביב לתאים (Supernatant).
לאחר החשיפה לנוגדנים נצפתה ירידה בסיגנל הקשור לנוכחות S1 על פני התאים, ובמקביל זוהה S1 במדיום. בהשוואה לנוגדני ביקורת שאינם גורמים לאותו תהליך, שני הנוגדנים הראו פעילות המתאימה ל־S1 shedding. השילוב בין שתי שיטות המדידה חשוב, מפני שהוא תומך בכך שהיחידה אכן משתחררת מהקומפלקס, ולא רק בכך שהסיגנל של שיטה אחת השתנה.
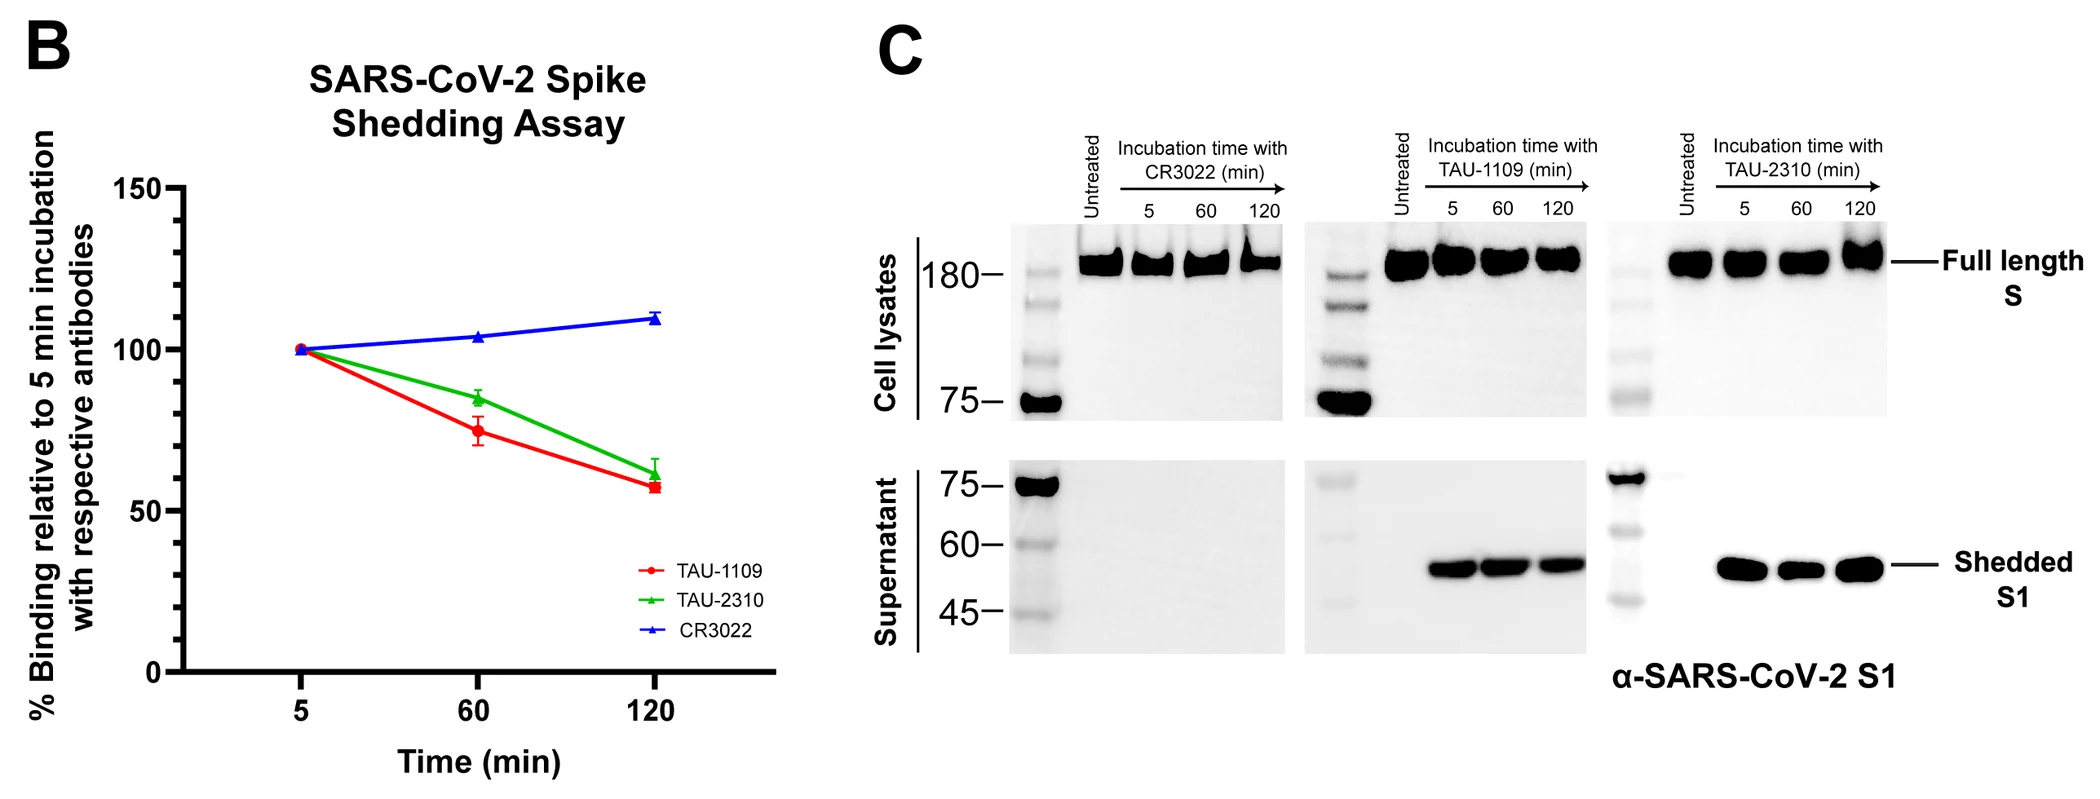
המשמעות הביולוגית היא ש־S1 נושא את ה־RBD הדרוש לזיהוי ACE2. כאשר S1 נפרד מהספייק, הקומפלקס שנותר מאבד את האזור הדרוש להיקשרות התקינה לרצפטור ולתחילת ההדבקה. לפיכך הנוגדנים מנטרלים את הווירוס בלי להתחרות ישירות על אתר הקישור של ACE2.
אין מדובר בהכרח בביקוע חדש של קשר קוולנטי בין S1 ל־S2; ההסבר מתמקד בערעור אינטראקציות לא־קוולנטיות המחזיקות את יחידות הספייק יחד לאחר העיבוד שעבר החלבון.
היפותזה שלישית: שילוב הנוגדנים בטיפול משולב
העובדה ש־TAU-1109 ו־TAU-2310 אינם חוסמים את אתר הקישור ל־ACE2 מעוררת אפשרות נוספת: האם ניתן להשתמש בהם יחד עם נוגדנים אחרים שמנטרלים את הווירוס על ידי חסימת אותו אתר?
ההיפותזה: מכיוון שאתרי הקישור שונים, אפשר יהיה לקשור את הנוגדנים הללו ואת הנוגדן האחר לאותו RBD, בלי שהם יתחרו על אותו מקום. שילוב נוגדנים המזהים אפיטופים שונים עשוי להיות שימושי בגישה של Antibody cocktail. עם זאת, היעדר חפיפה ישירה בין האפיטופים אינו מבטיח שלא תהיה הפרעה סטרית עקב הגודל והכיוון המרחבי של הנוגדנים.
כדי לבדוק זאת הושוו TAU-1109 ו־TAU-2310 לנוגדן SA55, שקושר אזור הקשור לאתר האינטראקציה עם ACE2. באמצעות Bio-Layer Interferometry (BLI) נבדק קישור עוקב של הנוגדנים לאותו RBD: תחילה נוגדן אחד, ואחריו השני, וכן בסדר הפוך. נצפתה תוספת סיגנל כאשר נקשר הנוגדן השני, נתון התומך בכך ששני הנוגדנים יכולים להיקשר בו־זמנית בלי למנוע זה מזה גישה לאפיטופ.
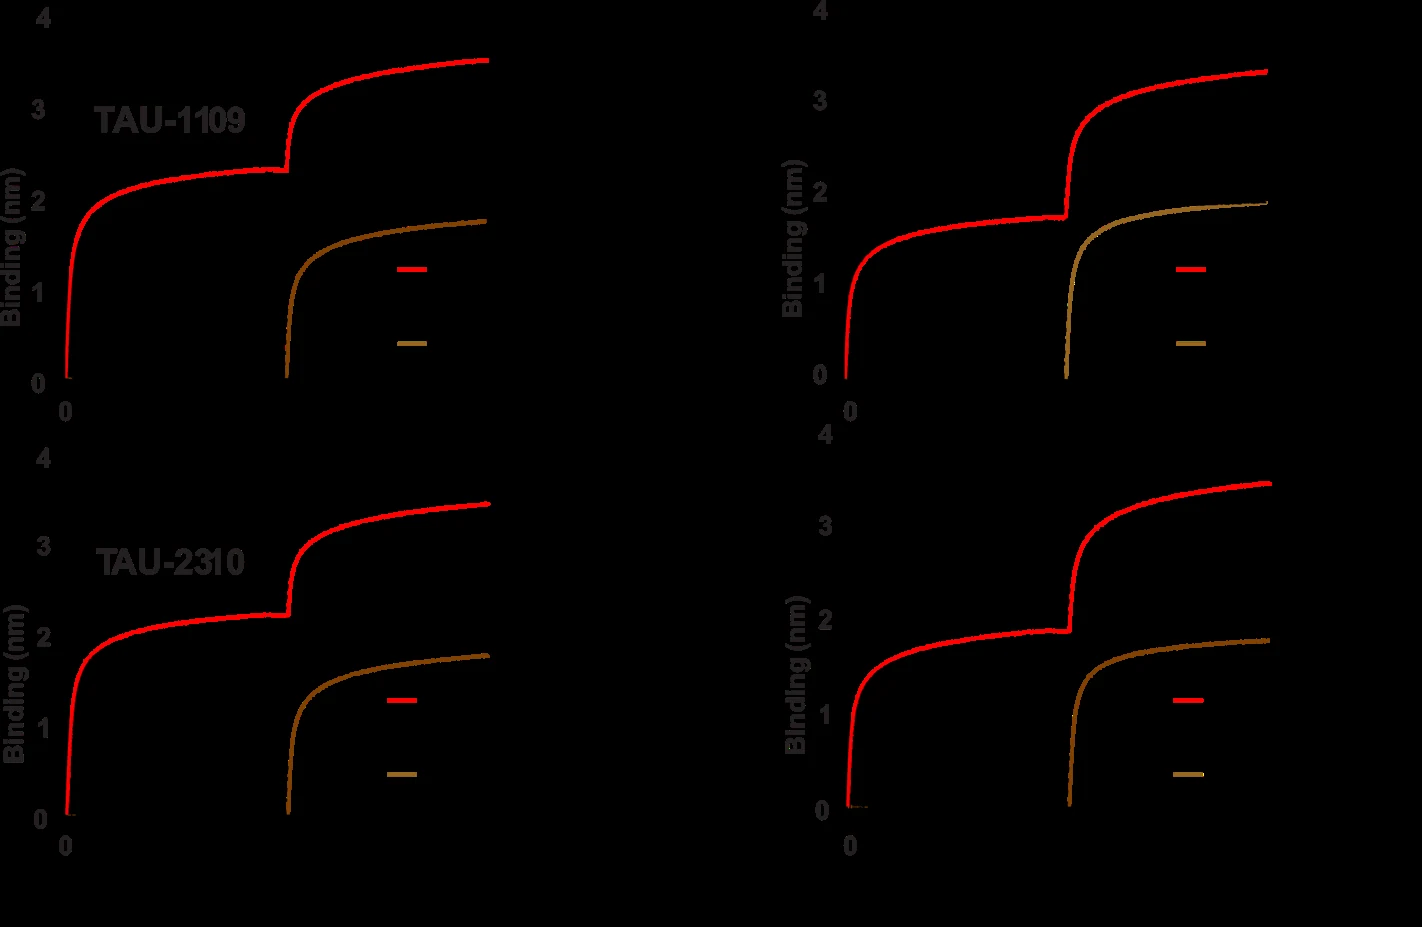
הממצא תומך בהיתכנות המבנית והביוכימית של שילוב הנוגדנים; הוא אינו מוכיח לבדו שקוקטייל כזה יהיה יעיל או בטוח כטיפול בבני אדם. תרומתו למחקר היא הדגמה נוספת של מעבר מתצפית להיפותזה חדשה, ולאחר מכן לתכנון ניסוי שבודק את הניבוי הספציפי שלה.
חלק 4 - תרגול: זיהוי שאלת מחקר והיפותזה מתוך Abstract
המקרה של NeoCoV
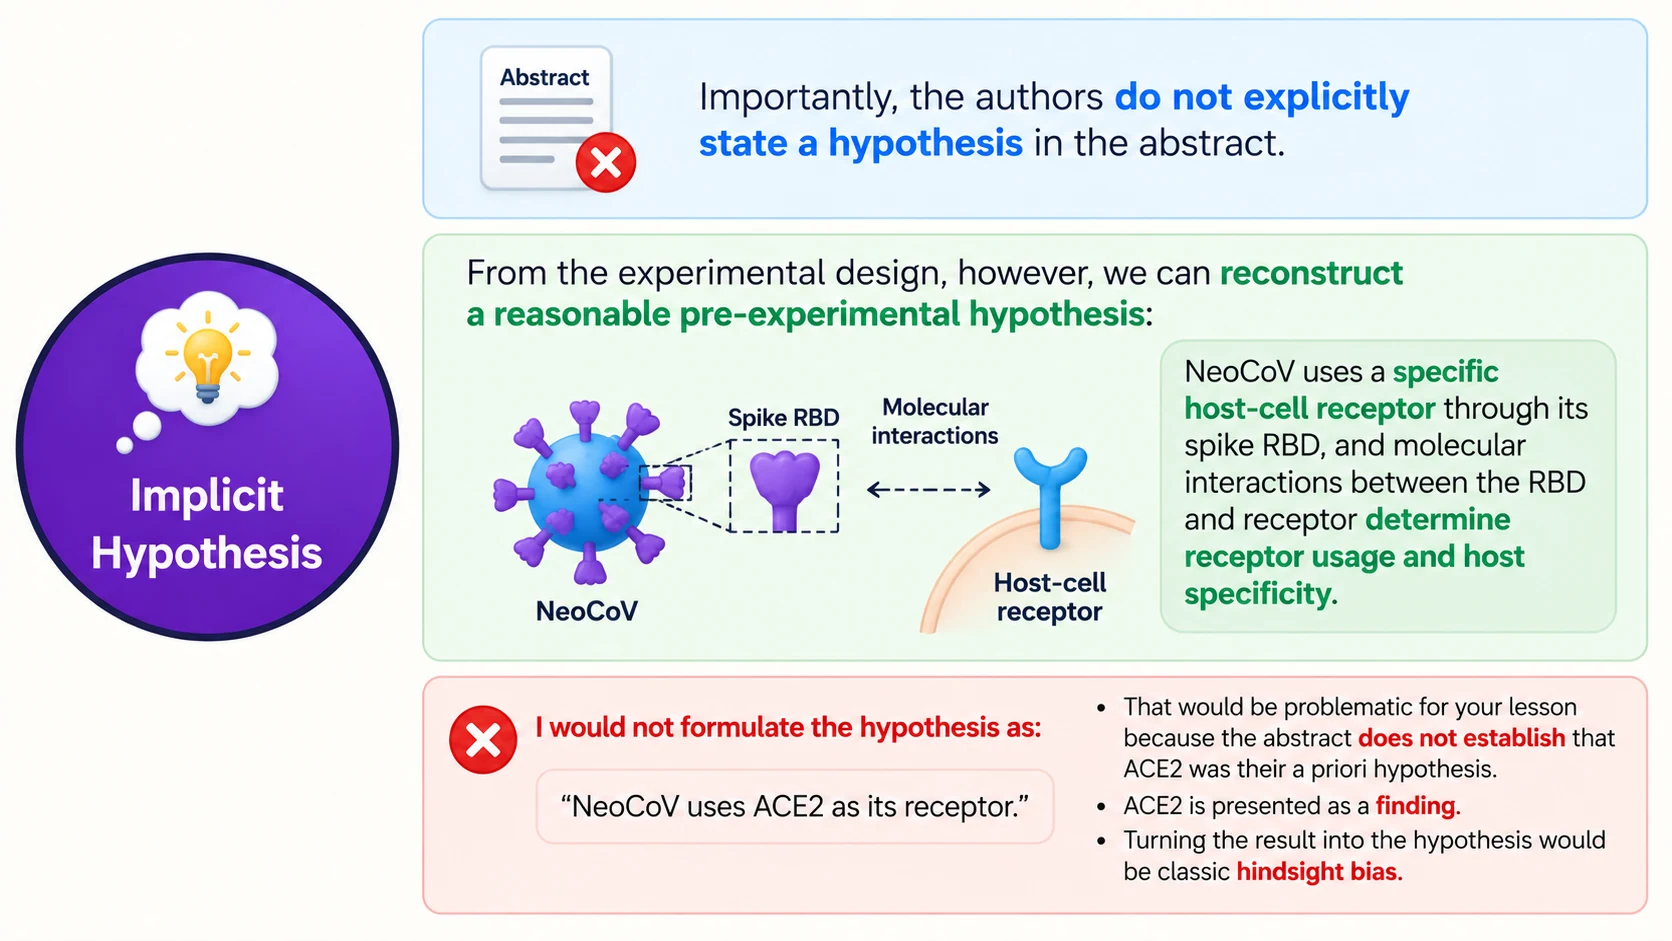
ניתוח Abstract של מאמר מדעי דורש להבחין בין ארבעה דברים: הידע הקיים, פער הידע, שאלת המחקר והתוצאות. לא כל מאמר מציג את ההיפותזה שלו במשפט נפרד בתוך ה־Abstract; לעיתים צריך לשחזר אותה מתוך ההקשר, השאלות והניסויים שנעשו. גם מטרות המחקר אינן בהכרח רשומות בו כרשימה מפורשת.
התרגול התבסס על מאמר העוסק בנגיפי קורונה הקרובים ל־MERS-CoV, ובפרט בנגיף NeoCoV ובקרובו PDF-2180. חלק מנגיפי הקורונה הקשורים ל־MERS משתמשים ברצפטור DPP4 לכניסה לתאים, אך לפני המחקר לא היה ידוע איזה רצפטור משמש את NeoCoV. זהו פער ידע מוגדר, שאפשר לבדוק אותו ישירות.
פער הידע ושאלת המחקר
פער הידע: הרצפטור המתווך את כניסת NeoCoV לתא טרם זוהה, והמנגנון המולקולרי של זיהוי הרצפטור עדיין אינו ברור.
שאלת המחקר: איזה רצפטור תאי מאפשר ל־NeoCoV להיכנס לתאים, ומהו הבסיס המולקולרי לאינטראקציה בין הרצפטור לבין הווירוס?
פער הידע מתאר את מה שלא ידוע; השאלה הופכת את אותו חסר למשהו שאפשר לחקור. לעומת זאת, משפט המציג איזה רצפטור נמצא בסוף המחקר הוא כבר תוצאה, ולא שאלת המחקר המקורית.
שחזור ההיפותזה
ניתן לנסח היפותזה כללית ולבדוק אותה באמצעות הניסויים המתוארים במחקר:
NeoCoV משתמש ברצפטור מוגדר על פני תא המטרה באמצעות ה־RBD שבחלבון הספייק, והאינטראקציות המולקולריות בממשק RBD-Receptor קובעות באילו רצפטורים ותאים הוא מסוגל להשתמש.
היפותזה זו אינה מניחה מראש שמדובר דווקא ב־ACE2, אם זה עדיין הדבר שמבקשים לברר. עם זאת, אפשר לבחון את ACE2 כרצפטור מועמד ולבנות ניסויים שבהם משווים בין תאים המבטאים אותו לתאים שאינם מבטאים אותו. יש להבחין בין בחירת מועמד סביר לבדיקה לבין הצגת המועמד כעובדה שכבר הוכחה.
מטרות המחקר (Research aims)
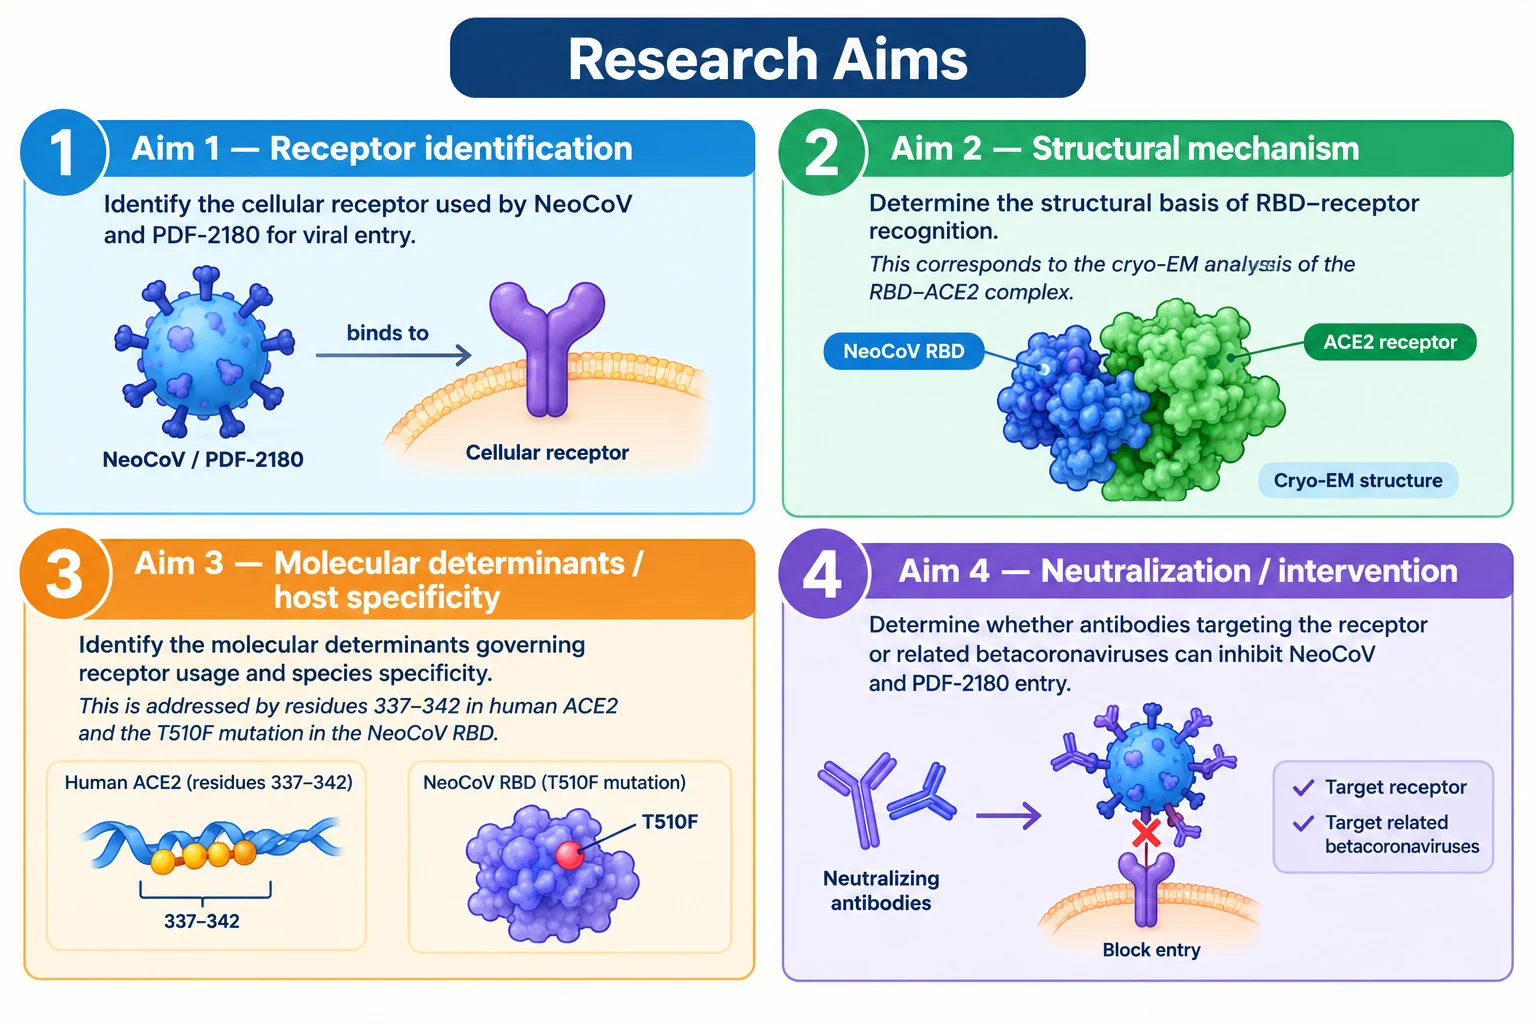
מהשאלה ומההיפותזה אפשר לגזור ארבע מטרות מרכזיות, שכל אחת מהן מקדמת היבט אחר של ההסבר:
| מטרה | מה מבקשים לבחון? | כיצד הדבר נבדק במחקר? |
|---|---|---|
| Aim 1 - Receptor identification | איזה רצפטור מאפשר ל־NeoCoV להיכנס לתא? | בדיקת כניסת נגיף מדומה (Pseudotyped virus) לתאים המבטאים רצפטורים מועמדים, ובכללם גרסאות שונות של ACE2. |
| Aim 2 - Structural mechanism | כיצד ה־RBD מזהה את הרצפטור שלו? | פתרון המבנה של קומפלקס RBD-ACE2 באמצעות Cryo-electron microscopy, לזיהוי ממשק הקישור. |
| Aim 3 - Molecular determinants / Host specificity | אילו חומצות אמינו קובעות את יכולת הקישור ואת ההבדלים בין מינים? | בחינת שינויים ברצפטור וב־RBD ומדידת השפעתם על הכניסה לתאים. |
| Aim 4 - Neutralization / Intervention | אילו נוגדנים מסוגלים לחסום את כניסת הנגיף? | בדיקת נוגדנים קיימים נגד קורונה, נוגדנים המכוונים ל־ACE2 ונוגדנים מנטרלים אחרים. |
דוגמאות לממצאים שמאפשרים לבחון את ההיפותזה
המחקר מצא ש־NeoCoV ו־PDF-2180 יכולים להשתמש בגרסאות מסוימות של ACE2 של עטלפים לצורך כניסה לתאים. יכולת הכניסה באמצעות ACE2 אנושי הייתה מוגבלת יותר במערכת שנבדקה. באמצעות בדיקת מבנה קומפלקס RBD-ACE2 ניתן היה לזהות אינטראקציות מולקולריות רלוונטיות, ובאמצעות ניסויי מוטגנזה ניתן היה לבחון את משמעותן.
בין היתר, המחקר זיהה את אזור חומצות האמינו 337-342 של ACE2 האנושי כגורם המגביל את הכניסה, וכן הראה שמוטציה T510F ב־RBD של NeoCoV מאפשרת כניסה יעילה יותר במערכת של נגיף מדומה לתאים המבטאים ACE2 אנושי. בנוסף, נבדקו נוגדנים המכוונים לנגיפי קורונה אחרים: לא כולם ניטרלו את NeoCoV ו־PDF-2180, ואילו חלק מהנוגדנים שנבדקו כן עיכבו את הכניסה שלהם.
הבדיקות האלה ממחישות כיצד מטרה מחקרית מובילה לניסוי ולמדד, וכיצד מכלול של ניסויים תפקודיים, מבניים וניסויי מוטציות יכול לתמוך בהסבר ביולוגי. ממצאים ממערכת של Pseudotyped virus אינם כשלעצמם הוכחה להדבקה יעילה של בני אדם בנגיף טבעי; הם משמשים להבנת יכולת הכניסה והמנגנון במערכת הניסויית.
איך מזהים את רכיבי המחקר בתוך Abstract?
כאשר קוראים תקציר, יש להפריד בין ניסוחים מסוגים שונים:
| רכיב | השאלה שיש לשאול בעת הקריאה | דוגמה מתוך מחקר NeoCoV |
|---|---|---|
| Existing knowledge | מה כבר ידוע? | נגיפי קורונה הקשורים ל־MERS משתמשים ברצפטורים תאיים לצורך כניסה לתאים. |
| Gap of knowledge | מה עדיין לא ידוע? | הרצפטור המשמש את NeoCoV אינו ברור. |
| Research question | מה רוצים לברר? | מהו הרצפטור של NeoCoV וכיצד מתרחש זיהויו? |
| Hypothesis | איזה הסבר או ניבוי מוצע? | כניסת הנגיף תלויה בקישור של ה־RBD לרצפטור מתאים ובאינטראקציות מוגדרות ביניהם. |
| Research aims | אילו חלקים של השאלה צריך לבדוק? | זיהוי הרצפטור, פתרון המבנה, זיהוי גורמים מולקולריים ובדיקת נטרול. |
| Methods and results | מה נעשה ומה נמצא בפועל? | ניסויי כניסה, Cryo-EM, מוטגנזה ובדיקות נוגדנים; זיהוי שימוש ב־ACE2 בתנאים שנבדקו. |
הניסוי הוא הדרך לבדוק את ההיפותזה, והממצא הוא מה שהתקבל בפועל. מסקנה היא הפרשנות של הממצאים ביחס לשאלה ולהיפותזה; אין לנסח אותה כאילו הייתה ידועה מראש.
חלק 5 - עקרונות מרכזיים לבניית מחקר
מחקר טוב אינו מתחיל בבחירת טכניקה, אלא ב־Gap of knowledge שהחוקר מסוגל להגדיר. שאלת המחקר ממקדת את החסר, ההיפותזה מציעה ניבוי או מנגנון אפשרי, ומטרות המחקר מפרקות את הדרך לבחינת ההסבר. התכנון הניסויי צריך לכלול מדידה רלוונטית, ביקורות מתאימות ואפשרות לזהות גם תוצאה שאינה תואמת את ההיפותזה.
הדוגמה של TAU-1109 ו־TAU-2310 ממחישה כיצד מחקר מתקדם על בסיס ידע חדש שנוצר תוך כדי עבודה: תחילה הוצעה היפותזה על אפיטופ שמור, לאחר מכן נוסחה היפותזה על S1 shedding, ובהמשך הועלתה אפשרות לשילוב נוגדנים הנקשרים לאתרים שונים. כל שלב הסתמך על התצפיות והניסויים שקדמו לו, ולא על ניסיון להצדיק בדיעבד את ההסבר הראשון.
הדוגמה של NeoCoV ממחישה את התהליך מהכיוון השני: מתוך תקציר של מחקר שכבר הושלם אפשר לשחזר את פער הידע ואת ההיפותזה שעמדה בבסיסו, ולהבין כיצד הניסויים השונים נגזרו ממטרות מחקר מוגדרות.
היכולת להציע היפותזה שאפשר לטעות לגביה היא יתרון מדעי, ולא חולשה. תוצאה הסותרת את ההיפותזה, בדומה לתצפית בלתי צפויה שמתקבלת בניסוי, יכולה לפתוח את הדרך להבנה חדשה - בתנאי שבודקים אותה באופן ביקורתי ומתכננים ניסויים המבחינים בין הסברים חלופיים.
דור פסקל